Mostrando entradas con la etiqueta UNIDAD 12. Mostrar todas las entradas

domingo, 18 de marzo de 2018

ESPECIACIÓN O FORMACIÓN DE NUEVAS ESPECIES

Hemos visto los mecanismos que hacen que las poblaciones evolucionen, es decir, que cambien sus frecuencias alélicas (microevolución, que no es negada por los creacionistas), de cuyo estudio matemático se ocupa la Genética de Poblaciones y de cuyo estudio en la naturaleza se ocupa la Genética Ecológica.
Pero ¿Cómo se forman especies nuevas o taxones de nivel superior nuevos? De ello se ocupa la Macroevolución.

La especiación es el mecanismo responsable de la enorme biodiversidad existente. El proceso se origina con la bifurcación o cladogénesis, originada por aislamiento reproductivo entre dos poblaciones o entre dos grupos de una población, debido a la aparición de barreras:

1) Precigóticas. Impiden la fecundación o fusión de gametos:

  1.1. Mecánicas: imposibilidad de copular.
  1.2. Etológicas: falta de interés sexual entre miembros de dos subgrupos dela población.
  1.3. Geográficas: existencia de cordilleras o barreras oceánicas que impiden la puesta en contacto de los dos grupos.

2) Postcigóticas. Dificultan la viabilidad de los individuos originados tras la fecundación: inviabilidad o esterilidad de los híbridos.

Hay dos mecanismos de especiación:

1. Especiación alopátrica o alopátrida (por aislamiento geográfico).

Resultado de imagen de especiacion alopatrica


2. Especiación simpátrica: dos grupos se van separando paulatinamente aunque vivan el mismo lugar, por ejemplo, un grupo de moscas que pongan sus huevos en el fruto del espino y otro en las manzanas, adaptándose cada uno al período de fructificación de cada árbol.

Resultado de imagen de especiacion simpatrica

Así se han ido originando a lo largo de 3.500 Ma los diferentes taxones:

1. Dominio (ej. Eucarya).
2. Reino (ej. Animal).
3. Filo (ej. Cordados).
4. Clase (p.ej. Mamíferos).
5. Orden (p.ej. Primates).
6. Familia. (p.ej. Homínidos).
7. Género (p.ej. Homo).
8. Especie (p.ej. H.sapiens).

Además de estos taxones hay otros intermdedios, como el subfilo Vertebrados.


sábado, 17 de marzo de 2018

VARIABILIDAD GENÉTICA Y EVOLUCIÓN

La ley de Hardy-Weinberg representa una población ideal, panmíctica (con cruzamientos aleatorios), lo suficientemente grande para que no se produzcan fenómenos de fluctuaciones aleatorias de las frecuencias alélicas (deriva genética) entre las diferentes generaciones (no solapadas), en la que no hay mutación, ni flujos génicos por migración ni selección de los genotipos más favorables en ese ambiente. Una población así es prácticamente inexistente.

Las poblaciones naturales no son totalmente panmícticas (p.ej. en las poblaciones humanas, los individuos tienden a aparearse con otros de su misma clase social o casta, como en la India), hay poblaciones relativamente pequeñas, fundadas por un pequeño grupo, en las que se da el efecto fundador o cuello de botella, y que se han mantenido en aislamiento reproductivo durante siglos, como los islandeses o los judíos, o poblaciones que casi se extinguieron y que lograron salvarse a partir de muy pocos individuos, como el lince ibérico. En todas las poblaciones aparecen mutaciones espontáneas del ADN, estas mutaciones y la posterior recombinación son la principal fuente de variabilidad genética.  Además, fenómenos como la inmigración aumentan la variabilidad genética de una población. Por otro lado, la selección natural altera las frecuencias alélicas, genotípicas y fenotípicas de una población, favoreciendo determinados alelos o combinaciones alélicas y tendiendo a eliminar otros. Todo ellos hace que las poblaciones no sean estáticas, sino que EVOLUCIONEN con el tiempo, cambiando sus características.

Resultado de imagen de variabilidad genetica

La Mutación es la fuente primaria de variabilidad genética, constituyendo un cambio estable y heredable en el ADN. Las mutaciones son aleatorias y preadaptativas, por lo que la mayoría son perjudiciales, otras son neutras (según la Teoría Neutralista de Motoo Kimura la mayoría de mutaciones no se expndirían por selección, sino por mero azar, es decir, recalca el papel de la deriva genética) y algunas beneficiosas bajo determinadas condiciones ambientales.

La Deriva Genética es la fluctuación aleatoria de las frecuencias alélicas en una población de una generacióna  la siguiente, y es resultado del nuestreo aleatorio en la reproducción, que tiene su origen en:
a) La Recombinación Genética durante la meiosis (profase I) y segregación aleatoria de cormosomas en la anafase I y de cromátidas en la anafase II.
b) El azar en la fusión de gametos por apareamientos aleatorios y qué gametos de uno y otro progenitor son los que se unen para formar el cigoto.

Las fluctuaciones debidas a la deriva genética se dan cuanto más pequeña es la población: el efecto fundador y los efectos de la deriva genética han producido una pérdida de variabilidad genética en la población islandesa que, debido a la práctica ausencia de inmigraciones a lo largo de 1.100 años (desde el 900 que se asentaron un millar de vikingos), se ha convertido en la población más homogénea de Europa, una especie de raza pura, lo que unido a un detallado registro genealógico, ha convertido a la población islandesa en el polo de atracción para investigadores de universidades o compañías biotecnológicas:

Icelander montage 2.png Islandia: experimento genético de un milenio

Otro ejemplo: Los amish de Pensilvania. En esta comunidad religiosa y extremadamente conservadora de Estados Unidos, está presente con frecuencia inusitada un gen escasísimo en el resto de la población mundial, que en estado de homocigosis provoca una combinación de enanismo y polidactilia. Desde que se formó en 1770, la comunidad amish ha presentado un porcentaje muchísimo más alto de esta enfermedad. De los amish que hay en el mundo, el 13% porta o manifiesta el gen afectado como consecuencia de que entre los 12 individuos fundadores, uno de ellos era portador del mismo.

La Migración produce un flujo genético, que aumenta la variabilidad genética en una población.  Los flujos migratorios de romanos y de las tribus germánicas incrementaron la frecuencia del grupo A en los peninsulares, en los cuales la frecuencia del grupo 0 era mayor que en la actualidad.

La Selección Natural de variaciones fenotípicas heredables se mide mediante la Eficacia Biológica o éxito reproductivo. es responsable de las adaptaciones de las poblaciones a su medio, escogiendo las variaciones más ventajosas. Es un proceso acumulativo.

En términos genéticos puede definirse como la contribución promedio de un alelo a las siguientes generaciones:
donde W=Eficacia Biológica ("Fitness"); l=Supervivencia y m=fecundidad.
También puede calcularse como el cociente entre el nº de individuos con determinado genotipo antes y después de la acción selectiva
Sin%20t%C3%ADtuloJ.jpg

Más sobre estos factores y la evolución en  Diferencias entre darwinismo y neodarwinismo


domingo, 4 de marzo de 2018

MUTACIONES Y CÁNCER

 Pictograma para agentes mutagénicos (cancerígenos o teratogénicos).

CRITERIO Y ESTÁNDAR DE APRENDIZAJE EVALUABLE

7. Contrastar la relación entre mutación y cáncer
7.1. Asocia la relación entre la mutación y el cáncer, determinando los riesgos que implican algunos agentes mutagénicos.

Se llama Carcinogénesis el mecanismo de formación y desarrollo de un cáncer  o neoplasia maligna.

Procesos:
1. Fallos en los mecanismos de control de la mitosis del ciclo celular.
2. Multiplicación descontrolada de las células, originando una neoplasia o tumor.
3. Invasión de otros tejidos o metástasis.

Las mutaciones pueden ser heredadas, espontáneas o inducidas por agentes carcinógenos.

Las sustancias cancerígenas inducen mutaciones en los Protooncogenes (genes que controlan la proliferación y diferenciación celular).

El 90% de los tipos de cáncer humanos están provocados por carcinógenos ambientales:
a) Físicos: radiación nuclear: Hiroshima y Nagasaki (1945), Chernobyl (1986), Goiânia (1987) por Cs-137, Fukushima (2011); rayos X y UV (exceso de luz).
b) Químicos presentes en el humo del tabaco, en los alimentos ahumados y churrascos (barbacoas), en las carnes rojas, en algunos aditivos alimentarios o en pesticidas como el glifosfato.
El 10%  se deben a infecciones víricas, como el virus del papiloma humano, o a genes heredados.

Para los tipos de cáncer más comunes en España (Las cifras del cáncer en España 2018)

Cáncer de pulmón (1º a nivel mundial y 3º en España, 2º en los hombres españoles): Lista de carcinógenos del tabaco: se han encontrado más de 30 tipos de carcinógenos en el humo del tabaco, entre los que destacan  el alquitrán, el benzopireno y las nitrosaminas. Además, el asbesto, mineral presente en los tejados de uralita.

Cáncer colorrectal (1º en España): alcohol.

Cáncer de próstata (2º en España y 1º en los hombres españoles): cadmio, VPH.

Cáncer de mama (4º en España y 1º en las españolas): lista de factores de riesgo.

El cáncer aparece cunado un protooncogen sufre una mutación y se convierte en un oncogen.
También aumenta el riesgo de padecer cáncer cuando los antioncogenes o genes supresores del cáncer (genes que codifican para los factores de necrosis tumoral TNF, que destruyen a las células cancerosas e inhiben la metástasis) sufren una mutación.

En el desarrollo de un cáncer hay 3 fases:
1. Iniciación. Se producen c. iniciadas.
2. Promoción. El tabaco, alcohol, etc. promocionan a las c.iniciadas, dando c. promocionadas.
3. Progresión. Las c. tumorales se hacen inmortales al recuperar la actividad telomerasa, perdida en las c. somáticas normales (Mª Blasco y la telomerasa).

UNIDAD 12: GENÉTICA DE POBLACIONES: MUTACIONES Y EVOLUCIÓN

UNIDAD 12
Resultado de imagen de GENETICA DE POBLACIONES

domingo, 19 de marzo de 2017

EVIDENCIAS O PRUEBAS DE LA EVOLUCIÓN

1. PRUEBAS PALEONTOLÓGICAS

Se observa en el registro fósil un aumento progresivo de la complejidad de los organismos, así como un aumento de la biodiversidad, interrumpido por 5 extinciones masivas (la última fue hace 65 Ma, en la que se extinguieron los dinosaurios no alados, hoy estamos en la 6ª gran extinción por la acción humana).
   1.1. FORMAS INTERMEDIAS. Ej.1. Archaeopteryx Imagen relacionada Forma intermedia,  de 150 Ma, entre los dinosaurios y las aves, descubierta en 1861 en las calizas litográficas de Solnhofen (Baviera), apoyando la teoría de Darwin, publicada dos años antes.


Resultado de imagen para archaeopteryx

Ej.2. Australopithecus, forma intermedia entre los primates no humanos como los ardipitecos y los humanos:
 
Resultado de imagen para australopithecus craneo Cráneo de A. afarensis. Este género, que vivió entre 4 y 2 Ma en África, fue establecido en 1925(Darwin publicó El Origen del Hombre en 1871). Este era el "eslabón perdido" que pedían los anti-evolucionistas y que Dart encontró.

Hoy día se han encontrado muchos eslabones entre los simios de hace 7 Ma y nosotros:


   1.2. SERIES FILOGENÉTICAS.

Ej. Los équidos:
 
Resultado de imagen para serie filogenética del caballo 
Otro ejemplo sería el mostrado anteriormente de los homínidos, pero realmente el concepto de serie filogenética como algo lineal y progresivo ha sido superado por los árboles filogenéticos, donde ramas separadas pueden incluso volver a encontrarse como pasó entre los sapiens que al salir de África se encontraron con los denisovanos en Asia y con los neandertales en Europa y Asia, de modo que actualmente los europeos llevamos como un 2% de ADN neandertal. También los habitantes de las islas de Andaman (India) y los aetas de las islas Filipinas llevan algo de ADN de alguna especie pre-sapiens.


2. PRUEBAS BIOGEOGRÁFICAS

Ya en el siglo XVII Rayleigh argumentó que la fauna americana no podía haber sido salvada en el Arca de Noé y que habría "evolucionado" a partir de las especies salvadas en el arca, tras alcanzar el continente americano, adaptarse a él y diversificarse.

Estas pruebas se basan en que cuanto más alejadas y separadas están dos zonas, más diferentes son su flora y su fauna, como pasa con la fauna australiana, que debido a la tectónica de placas, se separó antes del Pangea que los demás continentes (hace unos 200 Ma), quedando aislada desde entonces. Razón por la cual solo encontramos mamíferos monotremas en Australia (el ornitorrinco) y Nueva Zelanda (el equidna) y casi todas las especies marsupiales (canguros, koalas, etc.) en Australia. Los mamíferos placentarios surgieron después del aislamiento geológico de Australia, por lo que no forman parte de la fauna autóctona australiana.
Resultado de imagen para pruebas biogeograficas 

Resultado de imagen para pruebas biogeograficas 
Pinzones de Darwin, adaptados a las diferentes islas Galápagos y a diferentes tipos de alimentación. Pertenecen a una familia de pájaros americanos (Traúpidos, con 236 especies, de las que 14 viven en las Galápagos).
Los pinzones de Darwin muestran la evolución en directo (ABC, 2016) 

3. PRUEBAS EMBRIOLÓGICAS


Las hendiduras branquiales se siguen observando en los primeros estados embrionarios de todos los vertebrados. Haeckel, biólogo alemán que defendió la teoría de Darwin, estableció su Ley Biogenética: "La ontogenia recapitula la filogenia" (el desarrollo de un individuo recapitula las fases del desarrollo evolutivo de la especie). Aunque no es totalmente cierto, sí lo es que grupos emparentados comparten formas embrionarias o larvarias muy parecidas, como ocurre con la larva trocófora de Anélidos y Moluscos, mostrando un origen común:

Resultado de imagen para larva trocofora

4. PRUEBAS ANATÓMICAS

   4.1. ÓRGANOS HOMÓLOGOS. Tienen diferente forma externa pero la misma estructura interna , como ocurre con las extremidades de los vertebrados tetrápodos:

Resultado de imagen para organos homologos
Son consecuencia de una divergencia o radiación adaptativa: las diferentes familias de una misma clase (por ejemplo, los mamíferos) han divergido por adaptación a diferentes ambientes :


Todos los mamíferos proceden de mamíferos mesozoicos parecidos a las musarañas, por adaptación a los diferentes ambientes que quedaron libres tras la extinción de los dinosaurios (65 Ma).

4.2. ÓRGANOS ANÁLOGOS
Tienen una forma externa parecida pero estructura interna totalmente diferente.
Son resultado de una convergencia adaptativa, que aunque no permite establecer relaciones de parentesco evolutivo, sí muestran que las especies adoptan soluciones parecidas para adaptarse al mismo ambiente.
Resultado de imagen para organos analogos

4.3. ÓRGANOS VESTIGIALES
Resultado de imagen para organos vestigiales 
En el ser humano, el apéndice vermiforme podría tratarse de un órgano vestigial o atavismo de cuando nuestros antepasados eran más herbívoros (esta interpretación es controvertida, pues actualmente se tiende a pensar que no es un órgano vestigial, sino que tiene una función inmunológica). También la muela del juicio o 3º molar es un vestigio de cuando nuestros antepasados homínidos tenían mandíbulas mayores, con suficiente espacio para este 3º molar, que ayudaba en la masticación de una dieta más herbívora. Actualmente, la mandíbula menor hace que frecuentemente no haya espacio suficiente para un correcto desarrollo de esta muela y haya que extirparla. Por último, el pelo corporal es otro vestigio de nuestros antepasados.

 
 Lucy (Australopithecus)

 Homo erectus    


5. PRUEBAS BIOQUÍMICAS 

La comparación de las secuencias de aa de las proteínas o de nucleótidos del ADN de especies emparentadas, permite calibrar un reloj molecular:

Resultado de imagen para reloj molecular 
Resultado de imagen para reloj molecular primates

   Además de establecer relaciones de parentesco, las pruebas bioquímicas, como que todos los seres vivos comparten los mismos tipos de moléculas, que tienen prácticamente el mismo código genético, y que sus rutas metabólicas son casi idénticas, han puesto de manifiesto, sin lugar a dudas, que todos los seres vivos proceden de un antepasado común: LUCA.
Resultado de imagenLUCA: Last Universal Common Ancestor. 

Resumiendo, un par de pruebas de cada tipo:

1. Paleontológicas: formas intermedias ("eslabones perdidos y encontrados") como el Archaeopteryx y series filogenéticas, como la del caballo.

2. Biogeográficas: fauna de mamíferos australiana y pinzones de Darwin.

3. Embriológicas: embriones de vertebrados y larvas de invertebrados.

4. Anatómicas: órganos homólogos vs análogos y órganos vestigiales.

5. Bioquímicas: secuencias de ADN y de proteínas (más parecidas cuanto más emparentadas evolutivamente están dos especies) y código genético (cuasi)universal.

sábado, 11 de marzo de 2017

DIFERENCIAS ENTRE DARWINISMO Y NEODARWINISMO

1. Darwin desconocía los mecanismos de la herencia biológica, admitiendo la herencia de los caracteres adquiridos, algo que se asocia a Lamarck, pero que Darwin admitía, pues desconocía los trabajos de Mendel. El neodarwinismo nace de la genética (Dobzhansky era del grupo de T.H. Morgan, en cuyo laboratorio de las moscas nació la Teoría Cromosómica de la Herencia: los genes están alineados en los cromosomas), fusionando sus principios con el concepto fundamental de Darwin: la Selección Natural. Por tanto, el neodarwinismo rechaza radicalmente la herencia de los caracteres adquiridos lamarckista y darwinista.

 El darwinismo se basó básicamente en observaciones naturalistas de especies actuales en las islas o en la selva tropical. El neodarwinismo incorpora los conocimientos no sólo de la Genética, sino también de la Paleontología (uno de los principales defensores de la Teoría Sintética fue el paleontólogo estadounidense George G. Simpson, quien en su obra de 1944, Tiempo y Modo en Evolución, confirma, en base al registro fósil, mucho mejor conocido que en época de Darwin, que la evolución es un proceso gradual), de la Taxonomía (clasificación de los seres vivos) y de la Biogeografía (estudio de las causas de la distribución geográfica de los seres vivos), iniciada por Wallace (darwinista, escribió un libro en 1889 llamado Darwinismo) y desarrollada por Mayr (neodarwinista, quien introdujo el concepto de población como unidad evolutiva).

Charles Darwin y los darwinistas (Alfred R. Wallace y Ernst Haeckel):

Resultado de imagen de darwin Resultado de imagen de wallace Resultado de imagen de haeckel

Theodosius Dobzhansky y otros neodarwinistas (George G. Simpson y Ernst Mayr):

Resultado de imagen de dobzhansky Resultado de imagen de george g. simpson Resultado de imagen de ernst mayr

2. El darwinismo (Teoría de la evolución por selección natural) es una teoría decimonónica (del siglo XIX: Darwin publicó El Origen de las Especies en 1859), creada simultánea e independientemente por dos naturalistas británicos (Charles Darwin y Alfred Wallace) que viajaron por el mundo y estudiaron a fondo los ecosistemas insulares y tropicales (Darwin las Islas Galápagos, pertenecientes  a Ecuador, y Wallace las selvas indonesias y amazónicas). El neodarwinismo (Teoría Sintética de la Evolución) es una teoría del siglo pasado (XX), entre los años 30 y 40, creada fundamentalmente por genetistas estadounidenses (como Dobzhansky)*

 Resultado de imagen de dobzhansky

3. El darwinismo desconoce la genética de poblaciones y la propia existencia de mutaciones genéticas. El neodarwinismo considera la mutación la fuente primaria de variabilidad genética en las poblaciones (este concepto fue definido por el biólogo alemán Ernst Mayr, emigrado a EE UU en 1931, en su su libro Sistemática y el Origen de las Especies, uno de los libros fundamentales de la Teoría Sintética). Las mutaciones son aleatorias, siendo la mayoría de ellas perjudiciales, pero algunas (menos del 1%) pueden ser beneficiosas, dependiendo frecuentemente que sean beneficiosas o perjudiciales de las condiciones ambientales, como ocurre con la pigmentación melánica en humanos. Además, las mutaciones son preadaptativas: surgen como consecuencia de errores en la replicación del ADN y afectan a rasgos preexistentes, por lo que suelen ser perjudiciales, aunque ocasionalmente, pueden ser beneficiosas según las condiciones ambientales.

El neodarwinismo tiene en cuenta la genética de poblaciones (éstas son conjuntos de individuos de la misma especie que se pueden cruzar entre sí, compartiendo un pool o acervo o patrimonio genético, entendido éste como el conjunto de alelos en la totalidad de individuos de la población), pero yendo más allá de la ley de Hardy-Weinberg**, que calcula las frecuencias genotípicas en una población ideal (con apareamientos aleatorios, sin mutaciones, aislada genéticamente de otras, es decir, sin migraciones, y sin selección a favor o en contra de determinados alelos, además de que debe tener un tamaño infinitamente grande) ya que ésta es un modelo teórico que representa una situación estática.


 Sin embargo, los alelos mutan, están sometidos a deriva genética (fluctuación aleatoria o "error de muestreo" de las frecuencias alélicas de una generación a la siguiente, originado en el muestreo aleatorio en la reproducción, como consecuencia de la recombinación genética en la meiosis y el azar en la fusión de gametos durante la reproducción; este proceso es especialmente importante en poblaciones pequeñas, como los linces o los bisontes, donde se produce un cuello de botella genético por cuasi-extinción y posterior recuperación o un cuello de botella por efecto fundador, como ocurre con los islandeses, que proceden de unos cuantos vikingos que colonizaron Islandia hace un milenio, causando una disminución de la variabilidad genética).

El neodarwinismo también tiene en cuenta los flujos genéticos como consecuencia de las migraciones. Por otra parte, los apareamientos no son totalmente aleatorios dentro de la población: hay preferencias por los que comparten parentesco (apareamientos consanguíneos o endogamia), en los seres humanos, preferencia por los de la misma tribu, clase social, etc. Es decir, la realidad muestra que hay apareamientos selectivos (las personas eligen su pareja, las aves hembra eligen a los machos más vistosos, los mamíferos hembra se dejan cubrir por el macho alfa, etc.). La endogamia no altera las frecuencias alélicas pero sí las genotípicas, aumentando las frecuencias de homocigotos y disminuyendo las de heterocigotos. Las enfermedades recesivas como el albinismo aumenta en los descendientes de parejas endogámicas (así fue degenerando la casa real de los Austrias en España, culminando en la esterilidad de Carlos II el Hechizado).


4. La unidad de evolución darwinista es el individuo. La unidad de evolución neodarwinista es la población, como estableció Mayr.

5. El darwinismo introdujo el concepto de supervivencia de los más aptos en la lucha  (competencia) por la vida (Selección Natural), produciéndose así la adaptación de los organismos a su medio.
El neodarwinismo  entiende la Selección natural como cambios en las frecuencias alélicas de una población como consecuencia de una reproducción diferencial o diferente Eficacia biológica: la selección natural provoca cambios en las frecuencias alélicas siempre que haya una variación fenotípica heredable, que afecta a la supervivencia o a la capacidad reproductiva de los organismos, es decir, existe una correlación entre las variantes genotípicas/fenotípicas y el éxito reproductivo (número de descendientes) o eficacia biológica.

Hay una selección estabilizadora que no produce cambio evolutivo, como ocurre con los árboles Ginkgo biloba, que se han mantenido prácticamente invariables desde hace 270 Ma (es un fósil viviente). Esta selección actúa cuando la mayoría de individuos de la población vive en condiciones óptimas, de modo que en este caso la selección natural actúa sólo sobre los individuos con fenotipos extremos, los que se apartan de la norma, eliminándolos.
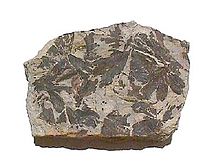

 Hojas fósiles del Jurásico      y      del Eoceno (56 a 40 Ma)
  Hoja actual Ginkgo

La selección diversificadora favorece los fenotipos extremos. es propia de medios poco uniformes, y con el tiempo lleva  a la especiación, como ocurrió con los pinzones de Darwin o pinzones de las Galápagos:


La selección diferencial favorece a los individuos que presentan uno de los fenotipos extremos cuando cambian las condiciones ambientales, como ocurrió con las polillas del abedul, Biston betularia:


6. El neodarwinismo explica la microevolución o cambios en las frecuencias alélicas en las poblaciones, que podría desembocar en la especiación (formación de nuevas especies a partir de una especie ancestral común) mediante mecanismos de aislamiento reproductor por barreras reproductoras pre- y post-cigóticas:


La macroevolución  es la formación de taxones superiores a la especie (nuevos géneros, familias, órdenes, clases o filos). Según la Teoría Sintética, las únicas diferencias entre micro- y macro-evolución se deben a la diferente escala espacio-temporal.

En resumen

El Darwinismo admite:
a) una ascendencia común para todos los organismos.
b) una capacidad reproductiva elevada en un medio con recursos limitados.
c) una lucha por la supervivencia, compitiendo los individuos de la misma especie.
d) una capacidad innata de variación: todos los individuos son diferentes.
e) una supervivencia del más apto, dejando más descendientes, a los que dejan sus características.
f) una evolución por selección natural, escogiendo las variaciones que confieren al individuo una ventaja adaptativa.
g) una herencia de los caracteres adquiridos.
h) el individuo es la unidad de evolución.

El Neodarwinismo admite los primeros postulados del Darwinismo pero difiere en los dos últimos:
a) Las mutaciones son una fuente primaria de variabilidad genética y la segregación cromosómica y la recombinación genética meióticas así como la aleatoriedad de la unión de gametos en la reproducción sexual aumentan dicha variabilidad.
b) La variabilidad genética se traduce en nuevos fenotipos.
c) Las variantes alélicas tienen diferente eficacia biológica o éxito reproductivo.
d) La selección natural actúa sobre la variabilidad genética, de modo, que generación tras generación, se modifican las frecuencias alélicas.
e) Los caracteres adquiridos no se heredan.
f) La unidad de evolución es la población.

Más sobre Variabilidad genética y evolución

Dobzhansky, principal autor. había nacido en el Imperio Ruso pero en 1927 emigró a EE UU; es autor del famoso aforismo: "Nada tiene sentido en Biología si no es a la luz de la evolución", es decir, toda la Biología actual se explica por el paradigma de la evolución

**enunciada independientemente por estos dos científicos en 1908, 26 años después de la muerte de Darwin

UNIDAD 12: GENÉTICA DE POBLACIONES: MUTACIONES Y EVOLUCIÓN


CONTENIDOS
CRITERIOS DE EVALUACIÓN
ESTÁNDARES DE APRENDIZAJE
B3
        Mutaciones. Tiposgénicas,   cromosómicas y genómicas (aneuploidías que afectan a los autosomas y que afectan a los cromosomas sexuales y polipoidías).

LUNES 12 DE MARZO

 Los agentes mutagénicos: físicosquímicos .
  VIERNES16 DE MARZO


·        Mutaciones y cáncer: Carcinogénesis y mutaciones

VIERNES 16 DE MARZO

La genética de poblaciones: Ley de Hardy-Weinberg

·         Evidencias del proceso evolutivo: Pruebas o evidencias


 La selección natural. Principios. Mutación, recombinación y adaptación.
·        Darwinismo y neodarwinismo: la teoría sintética de la evolución.
Diferencias entre darwinismo y neodarwinismo

LUNES 19 DE MARZO

·  


·        Implicaciones de las mutaciones en la evolución y aparición de nuevas especies. La especiación.


·        Evolución y biodiversidad: Taxonomía natural.
MARTES 20 DE MARZO
6. Definir el concepto de mutación distinguiendo los principales tipos y agentes mutagénicos.
6.1. Describe el concepto de mutación estableciendo su relación con los fallos en la transmisión de la información genética.
6.2. Clasifica las mutaciones identificando los agentes mutagénicos más frecuentes.
7. Contrastar la relación entre mutación y cáncer
7.1. Asocia la relación entre la mutación y el cáncer, determinando los riesgos que implican algunos agentes mutagénicos.
11. Diferenciar distintas evidencias del proceso evolutivo.
11.1. Argumenta distintas evidencias que demuestran el hecho evolutivo.
12. Reconocer, diferenciar y distinguir los principios de la teoría darwinista y neodarwinista.
12.1. Identifica los principios de la teoría darwinista y neodarwinista, comparando sus diferencias.
13. Relacionar genotipo y frecuencias génicas con la genética de poblaciones y su influencia en la evolución.


14. Reconocer la importancia de la mutación y la recombinación. 


15. Analizar los factores que incrementan la biodiversidad y su influencia en el proceso de especiación.


13.1. Distingue los factores que influyen en las frecuencias génicas.
13.2. Comprende y aplica modelos de estudio de las frecuencias génicas en la investigación privada y en modelos teóricos. (LEY DE HARDY-WEINBERG)
14.1. Ilustra la relación entre mutación y recombinación, el aumento de la diversidad y su influencia en la evolución de los seres vivos. 

15.1. Distingue tipos de especiación, identificando los factores que posibilitan la segregación de una especie original en dos especies diferentes.